დნმ-ის რეპლიკაცია არის პროცესი, რომლის დროსაც უჯრედი თავისი დეზოქსირიბონუკლეინის მჟავის (დნმ) ასლს ქმნის. შედეგად ერთი ორჯაჭვიანი დნმ-ის მოლეკულის საფუძველზე წარმოიქმნება ორი ორჯაჭვიანი მოლეკულა. თითოეული მათგანი შეიცავს ერთ საწყის (მშობლიურ) და ერთ ახლად სინთეზირებულ ჯაჭვს. ამიტომ დნმ-ის გაორმაგებას ნახევრად კონსერვატიულ რეპლიკაციას უწოდებენ.
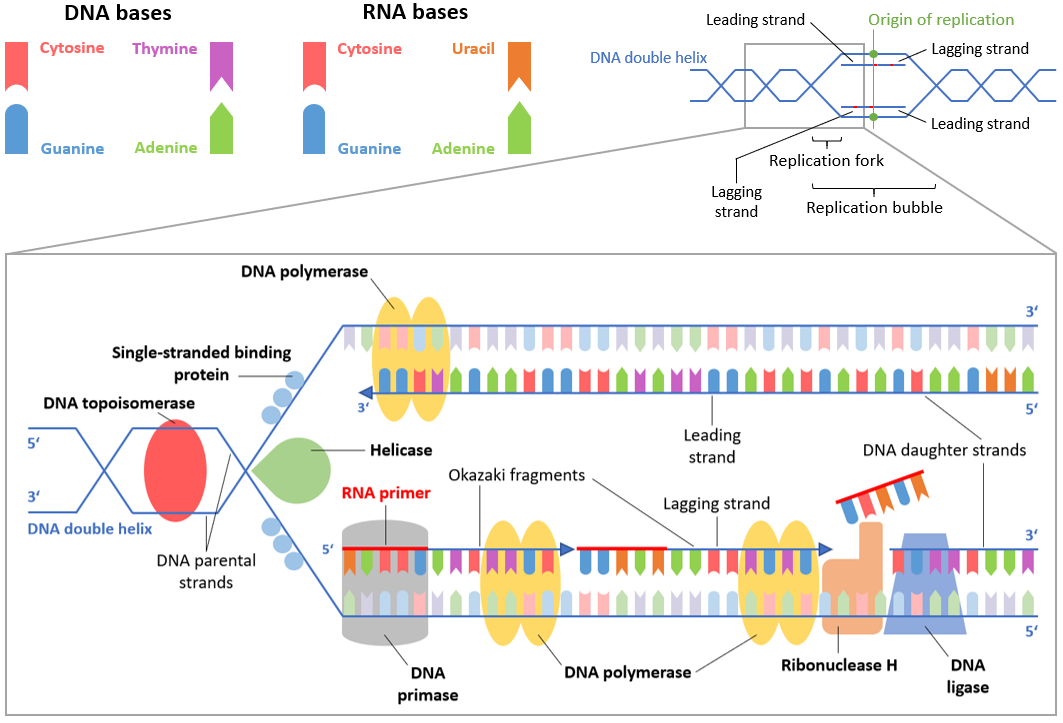
მოკლე განმარტება: დნმ-ის რეპლიკაცია გენეტიკური მასალის გაორმაგებაა. უჯრედი ჯერ აცალკევებს დნმ-ის ორ ჯაჭვს, შემდეგ კი თითოეული მათგანის მიხედვით შესაბამის ახალ ჯაჭვს ასინთეზებს. ამისთვის აუცილებელია ფერმენტებისა და ცილების კოორდინირებული მუშაობა: ჰელიკაზა შლის ორმაგ სპირალს, პრაიმაზა ქმნის საწყის მონაკვეთს, დნმ-პოლიმერაზა ამატებს ნუკლეოტიდებს, ხოლო ლიგაზა აერთებს ცალკეულ ფრაგმენტებს.
რეპლიკაცია უჯრედის გაყოფამდე გენეტიკური ინფორმაციის შენარჩუნების აუცილებელი ეტაპია. ბირთვიან უჯრედებში ქრომოსომული დნმ-ის რეპლიკაცია ჩვეულებრივ უჯრედული ციკლის S ფაზაში მიმდინარეობს; ბაქტერიებს კი ბირთვი არ აქვთ და დნმ-ის გამრავლება მათ ციტოპლაზმის ნუკლეოიდურ უბანში ხორციელდება. ქვემოთ განხილულია რეპლიკაციის ეტაპები, 5′→3′ მიმართულების მნიშვნელობა, წამყვანი და ჩამორჩენილი ჯაჭვები, ოკაზაკის ფრაგმენტები, რეპლიკაციის შეცდომები და განსხვავებები პროკარიოტებსა და ეუკარიოტებს შორის.
რა არის დნმ და რატომ სჭირდება მას რეპლიკაცია?
დნმ (დეზოქსირიბონუკლეინის მჟავა) მემკვიდრეობითი ინფორმაციის მატარებელი მოლეკულაა. იგი ძირითადად ორი, ერთმანეთის საწინააღმდეგო მიმართულებით განლაგებული ნუკლეოტიდური ჯაჭვისგან შედგება, რომლებიც ორმაგ სპირალს ქმნიან. გენეტიკური ინფორმაცია ნუკლეოტიდების აზოტოვანი ფუძეების მიმდევრობაშია ჩაწერილი.
უჯრედის ზრდისა და გაყოფის დროს მნიშვნელოვანია, რომ ახალმა უჯრედებმა გენეტიკური ინფორმაციის შესაბამისი ასლები მიიღონ. თუ დნმ არ გაორმაგდებოდა, უჯრედის ყოველი გაყოფისას გენეტიკური მასალის სრულყოფილი გადაცემა ვერ მოხერხდებოდა. რეპლიკაცია სწორედ ამ ამოცანას ასრულებს: ქრომოსომის თითოეული დნმ-ის მოლეკულის ასლი იქმნება, რათა შემდგომ უჯრედული გაყოფის დროს შესაბამისი ასლები შვილეულ უჯრედებს გადაეცეთ.
რეპლიკაცია არ ნიშნავს, რომ უჯრედი იმავე წამს ორ ნაწილად იყოფა. დნმ-ის გაორმაგება და უჯრედის გაყოფა სხვადასხვა, ერთმანეთთან დაკავშირებული პროცესებია. ჯერ გენეტიკური მასალა მრავლდება, შემდეგ კი გაყოფის მექანიზმები უზრუნველყოფენ მის განაწილებას.
დნმ-ის რეპლიკაციის მთავარი პრინციპი: კომპლემენტარობა
დნმ-ის ჯაჭვში ოთხი ძირითადი აზოტოვანი ფუძეა: ადენინი (A), თიმინი (T), გუანინი (G) და ციტოზინი (C). ორმაგ სპირალში მათთვის დამახასიათებელია კომპლემენტარული დაწყვილება:
- ადენინი (A) წყვილდება თიმინთან (T);
- გუანინი (G) წყვილდება ციტოზინთან (C).
ამ წესის გამო, თუ ერთი ჯაჭვის ფუძეების მიმდევრობა ცნობილია, შესაძლებელია შესაბამისი მეორე ჯაჭვის განსაზღვრაც. მაგალითად:
| დნმ-ის ჯაჭვი | ნუკლეოტიდური მიმდევრობა |
|---|---|
| მშობლიური ჯაჭვი | 5′–A T G C C A–3′ |
| კომპლემენტარული ჯაჭვი | 3′–T A C G G T–5′ |
ორივე ჯაჭვი ანტიპარალელურია: ერთი მოძრაობს 5′→3′ მიმართულებით, მეორე კი 3′→5′ მიმართულებით. ეს თავისებურება განსაზღვრავს, რატომ მიმდინარეობს ორი ახალი დნმ-ის ჯაჭვის წარმოქმნა სხვადასხვაგვარად.
რატომ ეწოდება რეპლიკაციას ნახევრად კონსერვატიული?
ნახევრად კონსერვატიული რეპლიკაცია ნიშნავს, რომ გაორმაგების შემდეგ თითოეული შვილეული ორჯაჭვიანი დნმ შედგება ერთი ძველი, მშობლიური ჯაჭვისა და ერთი ახალი ჯაჭვისგან. ამგვარად, საწყისი დნმ-ის ორივე ჯაჭვი შაბლონად გამოიყენება და მთლიანად არ ქრება.
წარმოიდგინეთ ორნაწილიანი ტექსტი, რომლის თითოეული ნაწილი მეორის აღდგენისთვის საჭირო ინფორმაციას შეიცავს. უჯრედი საწყის ორ ნაწილს ერთმანეთისგან აცალკევებს და თითოეულის მიხედვით ახალ კომპლემენტარულ ნაწილს ქმნის. შედეგად მიიღება ორი წყვილი, რომელშიც ერთი ნაწილი ძველია, მეორე — ახლად შექმნილი.
ამ მოდელის სისწორე 1958 წელს მეთიუ მესელსონისა და ფრანკლინ სტალის ექსპერიმენტით დადასტურდა. მკვლევრებმა ბაქტერიებში დნმ-ის აზოტის იზოტოპების განაწილებას დააკვირდნენ. მათი შედეგები ნახევრად კონსერვატიული გამრავლების მოდელს შეესაბამებოდა და არ ემთხვეოდა კონსერვატიულ ან დისპერსიულ ვარიანტებს. OpenStax Biology 2e ამ ექსპერიმენტს დეტალურად აღწერს.
სამი ისტორიული მოდელი
| მოდელი | რა ხდებოდა ძველ და ახალ დნმ-თან? | შეფასება |
|---|---|---|
| კონსერვატიული | ერთი მოლეკულა მთლიანად ძველ ორ ჯაჭვს, მეორე კი ორ ახალ ჯაჭვს შეიცავდა | არ დადასტურდა |
| ნახევრად კონსერვატიული | თითოეული შვილეული მოლეკულა ერთ ძველ და ერთ ახალ ჯაჭვს შეიცავს | ექსპერიმენტულად დადასტურებული მოდელი |
| დისპერსიული | თითოეული ჯაჭვი ძველი და ახალი დნმ-ის მრავალი მონაკვეთის ნარევი იქნებოდა | არ დადასტურდა |
დნმ-ის რეპლიკაციის ეტაპები: როგორ მიმდინარეობს პროცესი?
სასკოლო ბიოლოგიაში რეპლიკაციას ხშირად სამ ძირითად ეტაპად განიხილავენ: ინიციაცია (დაწყება), ელონგაცია (ჯაჭვის გახანგრძლივება) და ტერმინაცია (დასრულება). რეალურად თითოეულ ეტაპზე მრავალი ცილა და ფერმენტი თანამშრომლობს.
1. ინიციაცია: რეპლიკაციის საწყისი უბნის ამოცნობა
რეპლიკაცია იწყება დნმ-ის სპეციალურ უბანში, რომელსაც რეპლიკაციის საწყისი წერტილი (origin of replication) ეწოდება. ამ უბანზე შესაბამისი ცილები იკრიბება და დნმ-ის ორმაგი სპირალის გაშლის პროცესი იწყება.
ჰელიკაზა ხსნის ორ ჯაჭვს შორის არსებულ წყალბადურ კავშირებს და წარმოქმნის Y-ის ფორმის რეგიონს, რომელსაც რეპლიკაციის ჩანგალი ეწოდება. გახსნილ ერთჯაჭვიან დნმ-ს სპეციალური ცილები იცავს, რათა ის ხელახლა არ შეწყვილდეს ან დაზიანდეს. გაშლისას წარმოქმნილ მექანიკურ დაძაბულობას ტოპოიზომერაზები ამცირებენ.
რეპლიკაცია ჩვეულებრივ ორმხრივად მიმდინარეობს: საწყისი უბნიდან ერთმანეთის საპირისპირო მიმართულებით ორი რეპლიკაციის ჩანგალი გადაადგილდება. ეუკარიოტულ ქრომოსომებზე მრავალი საწყისი უბანი გამოიყენება, რაც დიდი რაოდენობის დნმ-ის დროულად გაორმაგებას უწყობს ხელს.
2. პრაიმერის შექმნა: რატომ სჭირდება დნმ-პოლიმერაზას დასაწყისი?
დნმ-პოლიმერაზას არ შეუძლია სრულიად ახალი ჯაჭვის ნულიდან დაწყება: მას სჭირდება უკვე არსებული თავისუფალი 3′-OH ბოლო, რომელზეც ახალ ნუკლეოტიდს მიამაგრებს. ამ მიზნით ფერმენტი პრაიმაზა ქმნის მოკლე რნმ-ის მონაკვეთს, რომელსაც პრაიმერი ეწოდება.
პრაიმერი დნმ-ის სინთეზის საწყისი წერტილია. წამყვანი ჯაჭვისთვის რეპლიკაციის კონკრეტულ ჩანგალთან ჩვეულებრივ ერთი საწყისი პრაიმერია საჭირო, ჩამორჩენილი ჯაჭვის ყოველი ახალი ოკაზაკის ფრაგმენტისთვის კი ახალი პრაიმერი იქმნება.
3. ელონგაცია: ახალი დნმ-ის ჯაჭვის სინთეზი
დნმ-პოლიმერაზა დნმ-ის შაბლონის მიხედვით ახალ ჯაჭვს ნუკლეოტიდებს ამატებს. კომპლემენტარობის წესით ის ადენინის მოპირდაპირედ თიმინს, ხოლო გუანინის მოპირდაპირედ ციტოზინს ათავსებს. რეაქციისთვის გამოიყენება დეზოქსირიბონუკლეოზიდტრიფოსფატები: dATP, dTTP, dGTP და dCTP.
დნმ-პოლიმერაზა ახალ ჯაჭვს მხოლოდ 5′→3′ მიმართულებით აგრძელებს, რადგან ახალი ნუკლეოტიდი მზარდი ჯაჭვის 3′ ბოლოზე ემატება. სწორედ ამ წესის გამო განსხვავდება წამყვანი და ჩამორჩენილი ჯაჭვების სინთეზი.
4. პრაიმერების მოცილება და მონაკვეთების შეერთება
მას შემდეგ, რაც ახალი დნმ-ის მონაკვეთები შეიქმნება, საწყისი რნმ-ის პრაიმერები სპეციალური ფერმენტული მექანიზმებით იცვლება დნმ-ით. ამის შემდეგ დნმ-ლიგაზა აკავშირებს ერთმანეთთან მეზობელ მონაკვეთებს, მათ შორის ოკაზაკის ფრაგმენტებს, და ჯაჭვის შაქარ-ფოსფატურ ჩონჩხში დარჩენილ გაწყვეტებს ხურავს.
ლიგაზის მთავარი როლი მონაკვეთების შეერთებაა; ის არ არის ფერმენტი, რომელიც შაბლონის მიხედვით ნუკლეოტიდებს ერთ-ერთ ჯაჭვზე ამატებს, და არც რეპლიკაციის ყველა შეცდომას თავად ასწორებს.
5. ტერმინაცია: პროცესის დასრულება
რეპლიკაცია სრულდება, როდესაც შესაბამისი დნმ-ის მონაკვეთი ბოლომდე გადაიწერება და რეპლიკაციის ჩანგლები ერთმანეთს შეხვდება ან დნმ-ის დასასრულს მიაღწევს. ახალ მოლეკულებს შეიძლება დამატებითი დამუშავება და ერთმანეთისგან განცალკევება სჭირდებოდეთ, განსაკუთრებით წრიული ბაქტერიული ქრომოსომების შემთხვევაში.
შედეგი: ერთი ორჯაჭვიანი დნმ-ის მოლეკულისგან წარმოიქმნება ორი ორჯაჭვიანი ასლი, რომელთაგან თითოეულში ერთი ძველი და ერთი ახალი ჯაჭვია. ეს ასლები იდეალურ შემთხვევაში ერთნაირ გენეტიკურ ინფორმაციას შეიცავს, თუმცა მცირე რაოდენობის შეცდომები შესაძლოა მაინც დარჩეს.
წამყვანი და ჩამორჩენილი ჯაჭვები: რა განსხვავებაა?
დნმ-ის ორი მშობლიური ჯაჭვი ანტიპარალელურია, მაგრამ დნმ-პოლიმერაზას ახალი დნმ-ის შექმნა მხოლოდ 5′→3′ მიმართულებით შეუძლია. ამიტომ ერთ რეპლიკაციის ჩანგალთან ახალი ჯაჭვები განსხვავებული რეჟიმით წარმოიქმნება:
- წამყვანი ჯაჭვი (leading strand): იწარმოება უწყვეტად, რეპლიკაციის ჩანგლის გადაადგილების მიმართულებით.
- ჩამორჩენილი ჯაჭვი (lagging strand): იწარმოება მცირე მონაკვეთებად, ჩანგლის გადაადგილების მიმართ საპირისპირო მიმართულებით; მოგვიანებით ეს მონაკვეთები ერთდება.
სიტყვები „წამყვანი“ და „ჩამორჩენილი“ არ ნიშნავს, რომ ერთ-ერთს ყოველთვის მეორეზე ნაკლები გენეტიკური მნიშვნელობა აქვს. ორივე ახალი ჯაჭვის სინთეზი კოორდინირებულად მიმდინარეობს და საბოლოოდ ორივე სრულყოფილი დნმ-ის ასლის ნაწილად უნდა იქცეს.
| მახასიათებელი | წამყვანი ჯაჭვი | ჩამორჩენილი ჯაჭვი |
|---|---|---|
| სინთეზის წესი | უწყვეტი | წყვეტილი, ფრაგმენტებად |
| ახალი დნმ-ის ზრდის მიმართულება | 5′→3′ | 5′→3′ |
| მიმართულება ჩანგლის მიმართ | ჩანგლის გადაადგილებისკენ | ჩანგლის გადაადგილების საპირისპიროდ |
| პრაიმერები | საჭიროა საწყისი პრაიმერი | საჭიროა ახალი პრაიმერი ყოველი ფრაგმენტისთვის |
| ოკაზაკის ფრაგმენტები | არ წარმოიქმნება ამ ტიპით | წარმოიქმნება |
| ლიგაზის როლი | შესაძლებელია სხვა გაწყვეტების დახურვა | აუცილებელია ფრაგმენტებს შორის გაწყვეტების დასახურად |
საკონტროლო კითხვა: ჩამორჩენილი ჯაჭვი 3′→5′ მიმართულებით იქმნება? არა. ორივე ახალი დნმ-ის ჯაჭვი 5′→3′ მიმართულებით სინთეზდება. განსხვავება სინთეზის უწყვეტობასა და რეპლიკაციის ჩანგლის მიმართ მიმართულებაშია.
რა არის ოკაზაკის ფრაგმენტები?
ოკაზაკის ფრაგმენტები დნმ-ის მოკლე მონაკვეთებია, რომლებიც ჩამორჩენილი ჯაჭვის სინთეზისას წარმოიქმნება. როდესაც რეპლიკაციის ჩანგალი ახალ მონაკვეთს ხსნის, პრაიმაზა ქმნის ახალ პრაიმერს, პოლიმერაზა კი ამ პრაიმერიდან დნმ-ის მონაკვეთს ახანგრძლივებს. მოგვიანებით პრაიმერები იცვლება დნმ-ით და ლიგაზა ერთმანეთის გვერდით მდებარე ფრაგმენტებს აერთებს.
ბაქტერიებში ოკაზაკის ფრაგმენტები ხშირად დაახლოებით 1 000–2 000 ნუკლეოტიდს მოიცავს, ხოლო ეუკარიოტებში, ჩვეულებრივ, უფრო მოკლეა, დაახლოებით 100–200 ნუკლეოტიდი. ეს მხოლოდ ტიპური საორიენტაციო დიაპაზონებია და არა ყველა ორგანიზმისთვის უცვლელი რიცხვები.
სახელი უკავშირდება იაპონელ მკვლევრებს რეიჯი და ცუნეკო ოკაზაკებს, რომელთა კვლევამ წყვეტილი დნმ-ის სინთეზის მექანიზმის გაგებაში მნიშვნელოვანი როლი შეასრულა.
დნმ-ის რეპლიკაციის ფერმენტები და მათი ფუნქციები
რეპლიკაცია ერთი ფერმენტის მოქმედება არ არის. ეს არის სხვადასხვა ცილისა და ფერმენტის ერთობლივი მუშაობა, რომელსაც ზოგჯერ რეპლიკაციულ კომპლექსს ან რეპლისომას უწოდებენ.
| ფერმენტი ან ცილა | ფუნქცია რეპლიკაციაში |
|---|---|
| ჰელიკაზა | აშორებს ერთმანეთს დნმ-ის ორ ჯაჭვს და ხსნის ორმაგ სპირალს |
| ტოპოიზომერაზა | ამცირებს დნმ-ის გრეხასთან დაკავშირებულ მექანიკურ დაძაბულობას |
| ერთჯაჭვიან დნმ-თან დამაკავშირებელი ცილები (SSB/RPA) | იცავს გახსნილ ერთჯაჭვიან დნმ-ს და ხელს უშლის ხელახალ შეწყვილებას |
| პრაიმაზა | ქმნის რნმ-ის საწყის მონაკვეთს — პრაიმერს |
| დნმ-პოლიმერაზა | ამატებს კომპლემენტარულ ნუკლეოტიდებს ახალ დნმ-ის ჯაჭვს 5′→3′ მიმართულებით |
| პრაიმერების მოსაცილებელი ფერმენტები | აშორებენ რნმ-ის მონაკვეთებს, რომლებიც შემდეგ დნმ-ით იცვლება |
| დნმ-ლიგაზა | ხურავს დნმ-ის ჩონჩხში არსებულ გაწყვეტებს და აერთებს ფრაგმენტებს |
| მოცურავე სამაგრი (sliding clamp/PCNA) | ეხმარება პოლიმერაზას დნმ-თან სტაბილურად დაკავშირებას |
ცალკეულ ორგანიზმებში ამ ფერმენტების კონკრეტული სახელები და ფუნქციების განაწილება განსხვავდება. მაგალითად, Escherichia coli-ში მთავარი რეპლიკაციული ფერმენტია დნმ-პოლიმერაზა III, რნმ-ის პრაიმერის მოცილებასა და დნმ-ით ჩანაცვლებაში მნიშვნელოვანი როლი აქვს დნმ-პოლიმერაზა I-ს. ეუკარიოტულ უჯრედში კი მთავარ როლებს, მათ შორის, პოლიმერაზები α, δ და ε ასრულებენ.
რა მიმართულებით ხდება დნმ-ის რეპლიკაცია და რატომ?
ახალი დნმ-ის ჯაჭვი ყოველთვის იზრდება 5′→3′ მიმართულებით. ამ ჩანაწერში ციფრები დეზოქსირიბოზის შაქრის ატომების ნომრებს აღნიშნავს. ახალ ნუკლეოტიდს პოლიმერაზა მზარდი ჯაჭვის თავისუფალ 3′-OH ჯგუფს უმატებს.
ამავე დროს მშობლიურ, შაბლონურ ჯაჭვს პოლიმერაზა კითხულობს 3′→5′ მიმართულებით. სწორედ ამიტომ, როდესაც მშობლიური ჯაჭვები ერთმანეთის საწინააღმდეგო მიმართულებით არის განლაგებული, ერთ ჩანგალთან ერთი ახალი ჯაჭვი უწყვეტად იზრდება, მეორე კი ფრაგმენტებით.
რეპლიკაცია ხშირად „დნმ-ის გახსნად“ აღიწერება, მაგრამ მხოლოდ სპირალის გაშლა არ არის საკმარისი. საჭიროა კომპლემენტარული ფუძეების ამოცნობა, ახალი ფოსფოდიესტერული ბმების წარმოქმნა, საწყისი პრაიმერების დამუშავება და შეცდომების კონტროლი.
სად და როდის მიმდინარეობს დნმ-ის რეპლიკაცია?
ეუკარიოტული უჯრედის ბირთვში: S ფაზა
ცხოველებისა და მცენარეების ტიპურ ბირთვიან უჯრედებში ქრომოსომული დნმ-ის რეპლიკაცია მიმდინარეობს ინტერფაზის S ფაზაში. უჯრედული ციკლის ზოგადი მიმდევრობაა G1 → S → G2 → M. G1 ფაზაში უჯრედი იზრდება და მზადდება; S ფაზაში დნმ ორმაგდება; G2 ფაზაში მიმდინარეობს შემდგომი მომზადება და კონტროლი; M ფაზა უჯრედის გაყოფასთანაა დაკავშირებული.
რეპლიკაციის შედეგად ყოველი ქრომოსომა ჩვეულებრივ შედგება ორი დობილი ქრომატიდისგან, რომლებიც მოგვიანებით ერთმანეთს სცილდება. ეს არ ნიშნავს, რომ S ფაზის დასრულებისთანავე ქრომოსომების რაოდენობა ჩვეულებრივი გაგებით ორმაგდება: იზრდება დნმ-ის რაოდენობა, ხოლო დობილი ქრომატიდები ცალკეულ ქრომოსომებად გაყოფის შემდგომ ეტაპზე ითვლება.
ბირთვის გარდა ეუკარიოტებს აქვთ ორგანელების საკუთარი გენეტიკური მასალაც. მიტოქონდრიულ დნმ-ს და მცენარეებში ქლოროპლასტების დნმ-ს საკუთარი რეპლიკაციის მექანიზმები აქვთ, რომელთა რეგულაცია ბირთვული ქრომოსომების S ფაზასთან სრულად იდენტური არ არის.
პროკარიოტულ უჯრედში: ნუკლეოიდის უბანი
ბაქტერიებს მემბრანით შემოსაზღვრული ბირთვი არ აქვთ. მათი ქრომოსომული დნმ-ის ძირითადი ნაწილი განლაგებულია ნუკლეოიდის უბანში, რომელიც ციტოპლაზმაშია. რეპლიკაციაც აქ მიმდინარეობს და ხშირად დაკავშირებულია უჯრედის ზრდასა და ბინარულ გაყოფასთან.
მეტი ინფორმაციისთვის იხილეთ Fabula.ge-ს სტატია პროკარიოტული უჯრედები: აგებულება, ფუნქციები და განსხვავება ეუკარიოტებისგან. ციტოპლაზმისა და ციტოზოლის განსხვავებას კი განმარტავს ციტოპლაზმის აგებულებისა და ფუნქციების გზამკვლევი.
პროკარიოტული და ეუკარიოტული რეპლიკაციის შედარება
დნმ-ის რეპლიკაციის ძირითადი ქიმიური პრინციპები ორივე ტიპის უჯრედში მსგავსია: კომპლემენტარული ფუძეების წყვილები, პრაიმერები და 5′→3′ სინთეზი. განსხვავება უფრო მეტად გენომის ორგანიზებასა და პროცესში ჩართული ცილების სახეობებშია.
| მახასიათებელი | პროკარიოტებში | ეუკარიოტებში |
|---|---|---|
| რეპლიკაციის მდებარეობა | ნუკლეოიდის უბანი ციტოპლაზმაში | ბირთვული ქრომოსომებისთვის ბირთვი |
| ქრომოსომების ფორმა | ბაქტერიებში ხშირად წრიული, გამონაკლისებით | ბირთვში ჩვეულებრივ ხაზოვანი |
| საწყისი უბნების რაოდენობა | E. coli-ში ერთი; ზოგ პროკარიოტში შეიძლება რამდენიმე იყოს | დიდ ქრომოსომებზე მრავალი საწყისი უბანი |
| მთავარი პოლიმერაზა | ბაქტერია E. coli-ში დნმ-პოლიმერაზა III | პოლიმერაზები ε და δ, ინიციაციაში α |
| სინთეზის მიმართულება | 5′→3′ | 5′→3′ |
| წამყვანი და ჩამორჩენილი ჯაჭვები | ორივე არსებობს | ორივე არსებობს |
| რეპლიკაციის დრო | უჯრედის ზრდასა და გაყოფასთან დაკავშირებული | ბირთვული დნმ ჩვეულებრივ S ფაზაში |
| ტელომერები | ტიპურ წრიულ ბაქტერიულ ქრომოსომას არ აქვს | ხაზოვანი ქრომოსომების ბოლოებს იცავს ტელომერები |
მნიშვნელოვანი დაზუსტება: „ყველა პროკარიოტს ერთი წრიული ქრომოსომა და ერთი რეპლიკაციის საწყისი უბანი აქვს“ უნივერსალური წესი არ არის. არსებობს ბაქტერიები ხაზოვანი ქრომოსომებით და არქეები, რომელთა გენომსაც რამდენიმე საწყისი უბანი აქვს.
რეპლიკაციის სიზუსტე: როგორ ასწორებს უჯრედი შეცდომებს?
დნმ-ის ასლის შექმნისას უზარმაზარი რაოდენობის ნუკლეოტიდი უნდა ჩაიწეროს სწორი მიმდევრობით. შეცდომების სიხშირეს რამდენიმე მექანიზმი ამცირებს. პირველ რიგში, დნმ-პოლიმერაზა უპირატესად სწორ კომპლემენტარულ ნუკლეოტიდებს არჩევს. ბევრი რეპლიკაციული პოლიმერაზა ასევე ახორციელებს proofreading-ს, ანუ ახლად ჩამატებული ნუკლეოტიდის შემოწმებას.
ამ შემთხვევაში პოლიმერაზის 3′→5′ ეგზონუკლეაზური აქტივობა საშუალებას იძლევა, არასათანადოდ დაწყვილებული ბოლო ნუკლეოტიდი მოიცილოს და შემდეგ გაგრძელდეს სწორი სინთეზი. ყველა დნმ-პოლიმერაზას ასეთი აქტივობა არ აქვს, ამიტომ ორგანიზმები შეცდომების შემდგომი გასწორების სხვადასხვა სისტემასაც იყენებენ.
რეპლიკაციის შემდეგ შეუსაბამო ფუძეთა შეკეთების სისტემა (mismatch repair) ზოგი დარჩენილი შეცდომის გამოსწორებაში მონაწილეობს. მიუხედავად ამ მექანიზმებისა, ყველა შეცდომა არ სწორდება. თუ დნმ-ის მიმდევრობაში ცვლილება შენარჩუნდა, ის შეიძლება მუტაციად იქცეს.
მუტაცია ყოველთვის მავნე არ არის: ზოგი ცვლილება ნეიტრალურია, ზოგი ზიანს აყენებს ორგანიზმს, ხოლო ზოგჯერ გენეტიკურ მრავალფეროვნებასაც ქმნის. რეპლიკაციისა და დნმ-ის შეკეთების შეცდომების შესწავლას მნიშვნელობა აქვს მოლეკულურ ბიოლოგიაში, გენეტიკასა და სიმსივნის ბიოლოგიაში. NCBI Bookshelf-ის მიმოხილვა აღწერს რეპლიკაციის სიზუსტისა და პოლიმერაზის თვითშემოწმების მექანიზმებს.
რეპლიკაცია, ტრანსკრიფცია და ტრანსლაცია: რა განსხვავებაა?
სამივე პროცესი გენეტიკურ ინფორმაციას უკავშირდება, მაგრამ მათი მიზანი ერთნაირი არ არის.
| პროცესი | რა გამოიყენება შაბლონად? | რა წარმოიქმნება? | ძირითადი დანიშნულება |
|---|---|---|---|
| რეპლიკაცია | დნმ | დნმ | გენეტიკური მასალის გაორმაგება |
| ტრანსკრიფცია | დნმ | რნმ | გენეტიკური ინფორმაციის რნმ-ში გადატანა |
| ტრანსლაცია | ინფორმაციული რნმ | პოლიპეპტიდი/ცილა | რნმ-ის ინფორმაციის მიხედვით ამინომჟავების მიმდევრობის შექმნა |
დაიმახსოვრეთ: რეპლიკაცია არის დნმ-იდან დნმ-ის ასლის შექმნა; ტრანსკრიფცია დნმ-ის მიხედვით რნმ-ის წარმოქმნაა; ტრანსლაციისას კი რნმ-ის ინფორმაციის მიხედვით სინთეზდება ცილის ჯაჭვი. ეს ტერმინები ერთმანეთის შემცვლელები არ არის.
რა არის ტელომერები და რატომ სჭირდება ზოგ უჯრედს ტელომერაზა?
ეუკარიოტების ბირთვული ქრომოსომები, როგორც წესი, ხაზოვანია. მათი ბოლოები დაცულია ტელომერებით, ანუ განმეორებადი დნმ-ის თანმიმდევრობებისა და მათთან დაკავშირებული ცილების უბნებით. ჩამორჩენილი ჯაჭვის სინთეზისას ხაზოვანი ქრომოსომის ბოლოს რნმ-ის ბოლო პრაიმერის მოცილება ქმნის პრობლემას: ყველა დაკარგული ნუკლეოტიდის ჩვეულებრივი პოლიმერაზით შევსება ვერ ხერხდება.
ზოგი უჯრედი იყენებს ფერმენტს ტელომერაზას, რომელსაც საკუთარი რნმ-ის შაბლონი აქვს და ქრომოსომის ბოლოების გარკვეული მონაკვეთების გახანგრძლივება შეუძლია. ეს განსაკუთრებით მნიშვნელოვანია ზოგი ღეროვანი, სასქესო ხაზის და სხვა სპეციალიზებული უჯრედისთვის. ბევრ ჩვეულებრივ სომატურ უჯრედში ტელომერაზის აქტივობა დაბალია ან არ შეინიშნება.
ტელომერების დამოკლება დაკავშირებულია უჯრედულ დაბერებასთან, მაგრამ ეს კავშირი არ ნიშნავს, რომ ტელომერაზის ხელოვნური გააქტიურება ადამიანის დაბერების უსაფრთხო „მკურნალობაა“. ტელომერაზის აქტივობა სიმსივნური უჯრედების ნაწილშიც მაღალია, რის გამოც მისი ბიოლოგიური როლი გაცილებით რთულია. OpenStax-ის თავი ეუკარიოტულ რეპლიკაციაზე აღწერს ქრომოსომების ბოლოების გაორმაგების პრობლემას.
რატომ არის დნმ-ის რეპლიკაცია მნიშვნელოვანი?
- მემკვიდრეობითობა: გენეტიკური ინფორმაციის გადაცემა დედა უჯრედიდან შვილეულ უჯრედებზე.
- ორგანიზმის ზრდა: მრავალუჯრედიან ორგანიზმში ახალი უჯრედების წარმოქმნისთვის მომზადება.
- ქსოვილების განახლება: ზოგი უჯრედის ჩანაცვლებისა და დაზიანებული ქსოვილების აღდგენის პროცესებში მონაწილეობა.
- გამრავლება: გენეტიკური მასალის წინასწარი გაორმაგება უჯრედული გაყოფისა და სასქესო უჯრედების განვითარების შესაბამის ეტაპებზე.
- გენეტიკური სტაბილურობა: თითოეული უჯრედის გენომის რაც შეიძლება ზუსტი გადაცემა.
- გენეტიკური მრავალფეროვნება: იშვიათად დარჩენილი ცვლილებები ერთ-ერთი შესაძლო წყაროა გენეტიკური ვარიაციებისა.
რეპლიკაციისას გამოიყენება ნუკლეოტიდები, რომელთა ფოსფატური ჯგუფები დნმ-ის ჩონჩხის აუცილებელი ნაწილია. არაორგანული იონებისა და წყლის მნიშვნელობაზე დამატებით იხილეთ არაორგანული ნივთიერებები: კლასიფიკაცია, მაგალითები და როლი ორგანიზმში.
დნმ-ის რეპლიკაციის აღმოჩენის ისტორია: ძირითადი თარიღები
| წელი | მოვლენა | მნიშვნელობა |
|---|---|---|
| 1953 | ჯეიმს უოტსონმა და ფრენსის კრიკმა დნმ-ის ორმაგი სპირალის მოდელი აღწერეს, როზალინდ ფრანკლინისა და სხვა მკვლევრების მონაცემების საფუძველზე | დნმ-ის აგებულებამ შესაძლებელი გახადა მისი კოპირების პრინციპის ახსნა |
| 1956 | არტურ კორნბერგმა ბაქტერიიდან გამოყო დნმ-პოლიმერაზის აქტივობა | დნმ-ის სინთეზის ფერმენტული საფუძვლის გამოვლენა |
| 1958 | მესელსონისა და სტალის ექსპერიმენტი | ნახევრად კონსერვატიული რეპლიკაციის მოდელის დადასტურება |
| 1960-იანი წლები | ოკაზაკისა და თანამოაზრეების კვლევები | ჩამორჩენილი ჯაჭვის წყვეტილი სინთეზის დადგენა |
ეს მოვლენები გვიჩვენებს, რომ დნმ-ის რეპლიკაციის გაგება ერთ აღმოჩენაზე არ იყო დამოკიდებული: მეცნიერებმა ჯერ მოლეკულის სტრუქტურა აღწერეს, შემდეგ კი მისი კოპირების ფერმენტული და უჯრედული მექანიზმები თანდათან გამოავლინეს.
დნმ-ის რეპლიკაციის მოკლე კონსპექტი
- განმარტება: დნმ-ის რეპლიკაცია გენეტიკური მასალის გაორმაგებაა.
- პრინციპი: ნახევრად კონსერვატიული — ახალ ორმაგ სპირალში ერთი ძველი და ერთი ახალი ჯაჭვია.
- კომპლემენტარობა: A–T, G–C.
- დაწყება: რეპლიკაციის საწყისი უბნის ამოცნობა და ჰელიკაზის მიერ სპირალის გახსნა.
- პრაიმერი: პრაიმაზა ქმნის სინთეზის საწყის მონაკვეთს.
- ელონგაცია: დნმ-პოლიმერაზა ახალი ჯაჭვის ნუკლეოტიდებს მხოლოდ 5′→3′ მიმართულებით ამატებს.
- წამყვანი ჯაჭვი: სინთეზდება უწყვეტად.
- ჩამორჩენილი ჯაჭვი: სინთეზდება ოკაზაკის ფრაგმენტებად.
- ლიგაზა: აერთიანებს ფრაგმენტებს და ხურავს დნმ-ის ჩონჩხის გაწყვეტებს.
- დრო და ადგილი: ეუკარიოტული ბირთვული დნმ-ისთვის S ფაზა; პროკარიოტებში ნუკლეოიდის უბანი.
ხშირად დასმული კითხვები
რა არის დნმ-ის რეპლიკაცია მარტივი სიტყვებით?
დნმ-ის რეპლიკაცია არის დნმ-ის გაორმაგების პროცესი. საწყისი დნმ-ის ორი ჯაჭვი ერთმანეთს სცილდება და თითოეულის მიხედვით ახალი კომპლემენტარული ჯაჭვი იქმნება.
როდის მიმდინარეობს დნმ-ის რეპლიკაცია?
ეუკარიოტული უჯრედის ბირთვული დნმ-ის რეპლიკაცია ჩვეულებრივ მიმდინარეობს უჯრედული ციკლის S ფაზაში, უჯრედის გაყოფამდე.
სად მიმდინარეობს დნმ-ის რეპლიკაცია?
ბირთვიან უჯრედში ქრომოსომული დნმ ბირთვში მრავლდება, პროკარიოტულ უჯრედში კი — ციტოპლაზმის ნუკლეოიდურ უბანში. მიტოქონდრიულ და ქლოროპლასტურ დნმ-ს საკუთარი რეპლიკაციის სისტემები აქვთ.
რატომ არის რეპლიკაცია ნახევრად კონსერვატიული?
იმიტომ, რომ თითოეული ახალი ორჯაჭვიანი დნმ შეიცავს ერთ მშობლიურ და ერთ ახლად სინთეზირებულ ჯაჭვს.
რომელი ფერმენტი შლის დნმ-ის ორმაგ სპირალს?
ჰელიკაზა აცალკევებს დნმ-ის ორ ჯაჭვს და რეპლიკაციის ჩანგლის წარმოქმნას უწყობს ხელს.
რა ფუნქცია აქვს დნმ-პოლიმერაზას?
დნმ-პოლიმერაზა შაბლონის მიხედვით ახალ ჯაჭვს კომპლემენტარულ ნუკლეოტიდებს ამატებს. ბევრი რეპლიკაციული პოლიმერაზა შეცდომების შემოწმებასაც ახორციელებს.
რომელი მიმართულებით მიმდინარეობს დნმ-ის სინთეზი?
ახალი დნმ-ის ჯაჭვი იზრდება მხოლოდ 5′→3′ მიმართულებით. პოლიმერაზა ნუკლეოტიდს მზარდი ჯაჭვის 3′ ბოლოზე ამატებს.
რა არის რეპლიკაციის ჩანგალი?
რეპლიკაციის ჩანგალი არის Y-ის ფორმის უბანი, სადაც ორმაგი დნმ-ის ჯაჭვები ერთმანეთს სცილდება და ახალი ჯაჭვების სინთეზი მიმდინარეობს.
რა განსხვავებაა წამყვან და ჩამორჩენილ ჯაჭვს შორის?
წამყვანი ჯაჭვი სინთეზდება უწყვეტად, ხოლო ჩამორჩენილი — მოკლე ოკაზაკის ფრაგმენტების სახით. ორივე ახალი ჯაჭვი მაინც 5′→3′ მიმართულებით იზრდება.
რა არის ოკაზაკის ფრაგმენტები?
ეს არის დნმ-ის მოკლე მონაკვეთები, რომლებიც ჩამორჩენილი ჯაჭვის სინთეზისას წარმოიქმნება და მოგვიანებით ერთმანეთს უკავშირდება.
რა ფუნქცია აქვს დნმ-ლიგაზას?
დნმ-ლიგაზა აერთებს მეზობელ დნმ-ის მონაკვეთებს და ხურავს შაქარ-ფოსფატურ ჩონჩხში არსებულ გაწყვეტებს.
რაში სჭირდება უჯრედს რნმ-ის პრაიმერი?
დნმ-პოლიმერაზას ნულიდან დაწყება არ შეუძლია. რნმ-ის პრაიმერი აძლევს თავისუფალ 3′ ბოლოს, საიდანაც დნმ-ის ახალი მონაკვეთის სინთეზი იწყება.
რა განსხვავებაა რეპლიკაციასა და ტრანსკრიფციას შორის?
რეპლიკაციისას დნმ-ის მიხედვით ახალი დნმ იქმნება. ტრანსკრიფციისას კი დნმ-ის მიხედვით რნმ სინთეზდება.
დნმ-ის რეპლიკაცია იგივე მიტოზია?
არა. რეპლიკაცია დნმ-ის გაორმაგებაა, მიტოზი კი ეუკარიოტული უჯრედის ბირთვული გაყოფის პროცესია. რეპლიკაცია ჩვეულებრივ მიტოზს წინ უსწრებს.
შეიძლება რეპლიკაციისას შეცდომა მოხდეს?
დიახ. უჯრედს შეცდომების აღმოჩენისა და გასწორების რამდენიმე სისტემა აქვს, მაგრამ ზოგჯერ ცვლილება რჩება და მუტაციად შეიძლება იქცეს.
ტესტი: შეამოწმე ცოდნა
- რატომ ვუწოდებთ დნმ-ის რეპლიკაციას ნახევრად კონსერვატიულს?
- რა არის პრაიმაზის მთავარი ფუნქცია?
- თუ მშობლიური ჯაჭვია
3′–T A C G–5′, რა იქნება ახალი კომპლემენტარული ჯაჭვი? - რომელ მიმართულებით სინთეზდება ახალი დნმ?
- რომელ ჯაჭვზე წარმოიქმნება ოკაზაკის ფრაგმენტები?
- რა ფუნქცია აქვს ლიგაზას?
- რომელ ფაზაში მიმდინარეობს ეუკარიოტული ბირთვული დნმ-ის გაორმაგება?
- რა არის მთავარი განსხვავება დნმ-ის რეპლიკაციასა და ტრანსკრიფციას შორის?
პასუხები: 1. თითოეულ ახალ დნმ-ში ერთ ძველ და ერთ ახალ ჯაჭვს ვინარჩუნებთ; 2. რნმ-ის პრაიმერის შექმნა; 3. 5′–A T G C–3′; 4. 5′→3′; 5. ჩამორჩენილ ჯაჭვზე; 6. დნმ-ის მონაკვეთების დაკავშირება; 7. S ფაზაში; 8. რეპლიკაცია წარმოქმნის დნმ-ს, ტრანსკრიფცია — რნმ-ს.
გამოყენებული სამეცნიერო წყაროები
- OpenStax Biology 2e — 14.3 Basics of DNA Replication: ნახევრად კონსერვატიული მოდელი, კომპლემენტარობა და მესელსონისა და სტალის ექსპერიმენტი.
- OpenStax Biology 2e — 14.4 DNA Replication in Prokaryotes: რეპლიკაციის ჩანგალი, ფერმენტები, პროკარიოტული რეპლიკაციის ეტაპები.
- OpenStax Biology 2e — 14.5 DNA Replication in Eukaryotes: S ფაზა, მრავალრიცხოვანი საწყისი უბნები, დნმ-პოლიმერაზები და ტელომერები.
- NCBI Bookshelf, Molecular Biology of the Cell — DNA Replication Mechanisms: 5′→3′ სინთეზი, ოკაზაკის ფრაგმენტები და რეპლიკაციის სიზუსტე.
- NCBI Bookshelf, The Cell — DNA Replication: პოლიმერაზის ფუნქციები, proofreading და გენეტიკური ინფორმაციის კოპირება.
- OpenStax Biology 2e — Chapter 14 Summary: რეპლიკაციის ძირითადი მექანიზმებისა და დნმ-ის შეკეთების მიმოხილვა.
დასკვნა
დნმ-ის რეპლიკაცია სიცოცხლის ერთ-ერთი ფუნდამენტური მოლეკულური პროცესია: ის გენეტიკური ინფორმაციის თითქმის ზუსტ ასლებს ქმნის და უჯრედებს ზრდისა და გაყოფის შესაძლებლობას აძლევს. მისი ძირითადი პრინციპებია კომპლემენტარული ფუძეების დაწყვილება, ნახევრად კონსერვატიული მოდელი და ახალი დნმ-ის მხოლოდ 5′→3′ მიმართულებით სინთეზი. ჰელიკაზის, პრაიმაზის, დნმ-პოლიმერაზისა და ლიგაზის შეთანხმებული მუშაობა უზრუნველყოფს, რომ წამყვანი და ჩამორჩენილი ჯაჭვები სწორად წარმოიქმნას. ამ პროცესის ცოდნა აუცილებელია გენეტიკის, უჯრედული ციკლის, მემკვიდრეობითობისა და მუტაციების გასაგებად.